焦虑性抑郁症是一种常见的情感障碍,以典型的抑郁症状伴随持续性焦虑为特征,影响约40%的抑郁症患者,且临床预后较差。越来越多的证据表明,线粒体氧化应激和神经炎症在其发生发展中扮演关键角色,但两者之间的精确分子联系尚不明确。海马体作为情绪调节和应激反应的关键脑区,尤其易受应激损伤,其中的神经炎症和小胶质细胞活化会进一步加剧神经元损伤。
线粒体功能障碍通过破坏氧化还原稳态,促进线粒体活性氧(mtROS)的病理性过量产生,后者不仅是氧化磷酸化受损的有毒副产物,还与NLRP3炎症小体的激活密切相关。然而,从基因表达调控到蛋白功能的系统性分子机制研究仍存在空白。本研究采用整合蛋白质组学和转录组学策略,结合线粒体靶向抗氧化剂Mito-TEMPO干预和体外TXNIP敲低实验,系统解析了ROS/TXNIP/NLRP3信号轴在焦虑性抑郁症中的核心作用,为理解线粒体氧化应激与神经炎症的对话机制提供了新视角。
近日,湖南中医药大学孟盼和赵洪庆团队在《Frontiers in Immunology》(IF=7.0)发表了题为“From mitochondrial oxidative stress to neuroinflammation: integrated proteomic and transcriptomic profiling reveals the role of the ROS/TXNIP/NLRP3 signaling pathway in anxious depression”的研究论文,系统解析了ROS/TXNIP/NLRP3信号轴在焦虑性抑郁症中作为线粒体氧化应激与神经炎症对话机制的核心作用,并通过Mito-TEMPO干预和TXNIP敲低实验进行了功能验证。
唯誉智合为该研究提供了RNA测序服务和蛋白质组学分析,为机制验证与数据支撑提供了技术支持。
研究内容
CRS/CORT诱导大鼠焦虑和抑郁样行为
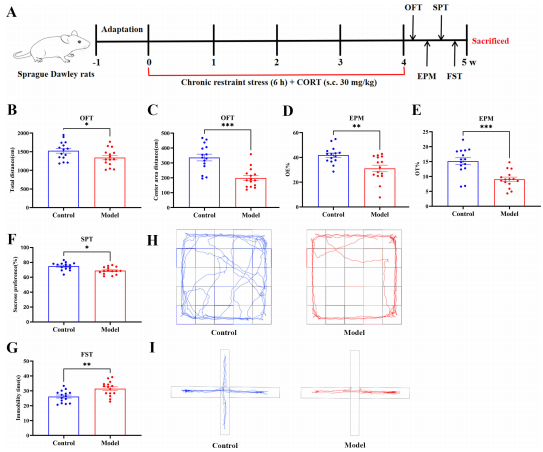
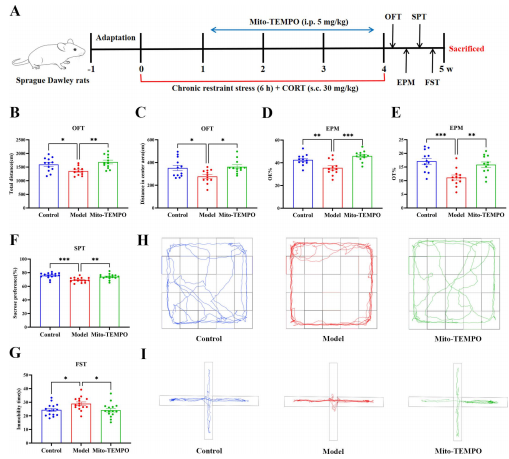
为验证焦虑性抑郁症模型,研究采用慢性束缚应激联合皮质酮(CRS/CORT)处理大鼠。旷场实验(OFT)显示,模型组大鼠总运动距离和中央区运动距离显著减少,表明焦虑样行为和运动抑制;高架十字迷宫(EPM)实验进一步证实了焦虑样行为,表现为开臂进入次数和时间百分比显著下降。糖水偏好实验(SPT)显示糖水偏好率降低,提示快感缺失;强迫游泳实验(FST)显示不动时间增加,表明行为绝望。这些结果证实CRS/CORT成功诱导了大鼠焦虑和抑郁样行为。
CRS/CORT破坏海马神经递质并触发神经元凋亡
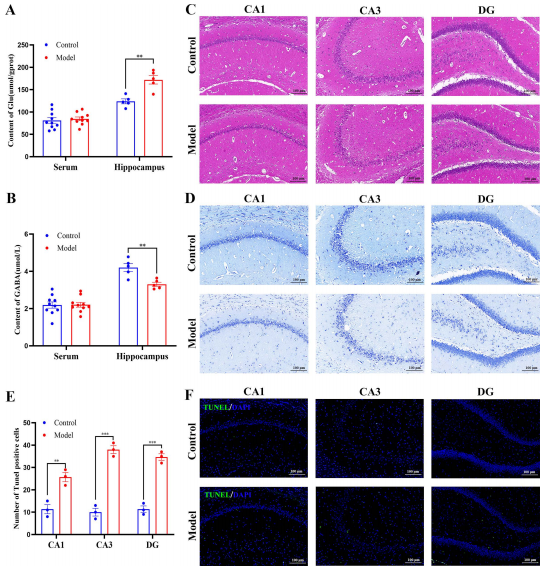
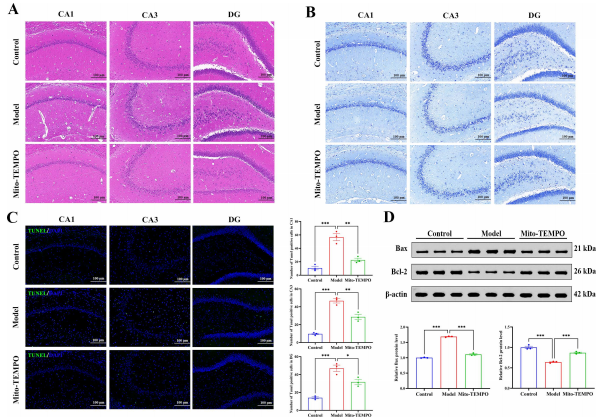
模型组海马组织谷氨酸(Glu)浓度显著升高,而γ-氨基丁酸(GABA)水平显著降低,表明神经递质稳态严重破坏。HE染色显示CA1、CA3和DG亚区神经元排列紊乱、核固缩和细胞密度降低;尼氏染色证实尼氏体广泛耗竭;TUNEL染色显示模型组TUNEL阳性神经元数量显著增加,表明神经元凋亡增强。
蛋白质组学揭示海马分子机制
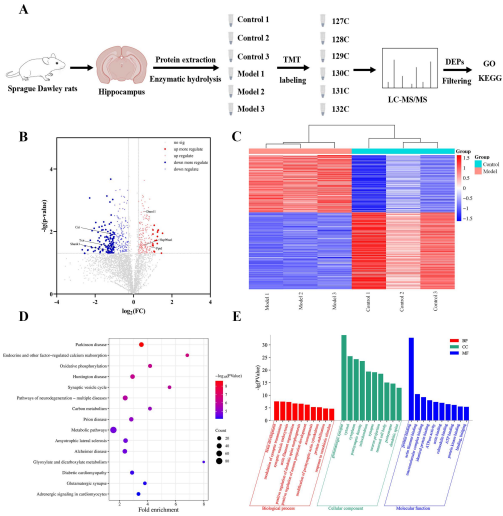
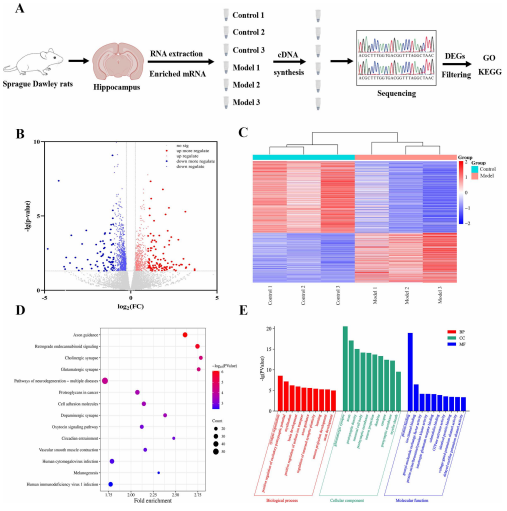
采用TMT标记的定量蛋白质组学分析,共鉴定到46342个肽段和4387个蛋白质。火山图分析显示212个显著上调蛋白和284个下调蛋白。聚类分析显示模型组上调蛋白富集于炎症和细胞骨架信号通路,而下调蛋白与抗氧化防御和代谢相关。KEGG富集分析鉴定出34条显著富集通路,其中帕金森病通路最为显著。GO分析显示突触功能和线粒体能量代谢相关生物学过程富集。
转录组学揭示海马潜在机制
RNA-seq分析鉴定出192个显著差异表达基因(DEGs),包括97个上调和95个下调基因。上调DEGs与炎症相关,下调DEGs与突触功能障碍相关。KEGG富集分析显示63条显著富集通路,其中轴突导向通路最为显著,内源性大麻素、胆碱能、谷氨酸能和GABA能信号通路也显著富集。GO分析强调突触信号和神经元发育的失调。
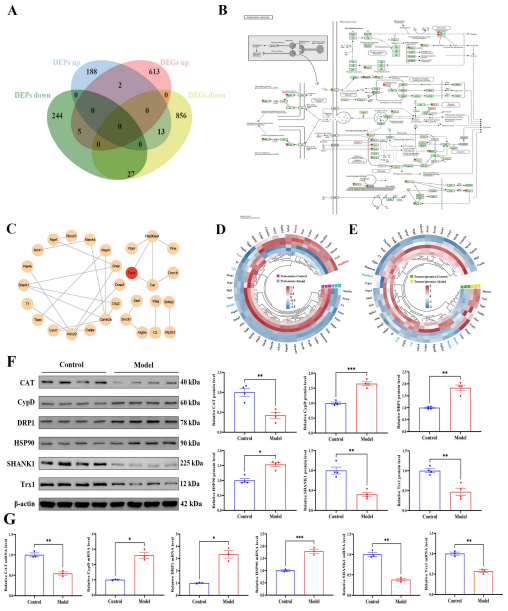
整合蛋白质组与转录组分析鉴定海马线粒体自噬通路的协同失调
整合分析发现613个基因在mRNA和蛋白水平同步下调。KEGG富集分析显示线粒体自噬通路显著富集,关键基因PINK1和Parkin表达失调,提示线粒体质量控制受损。PPI网络分析鉴定出硫氧还蛋白-1(Trx1)为高度互作枢纽。蛋白质组和转录组均证实线粒体分裂、抗氧化反应和突触完整性相关分子表达紊乱。Western blot和qPCR验证了这些发现。
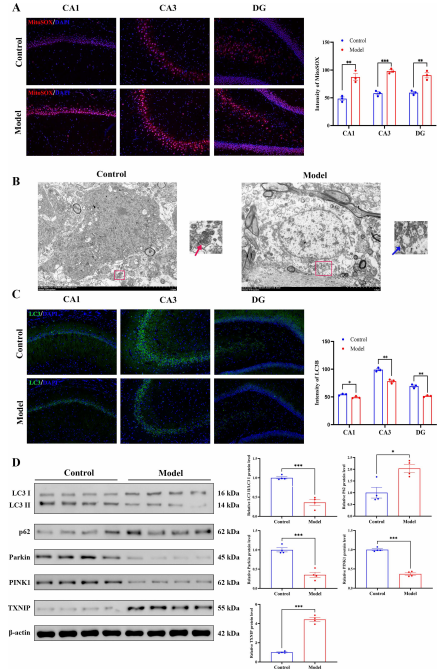
CRS/CORT抑制线粒体自噬,破坏受损线粒体清除
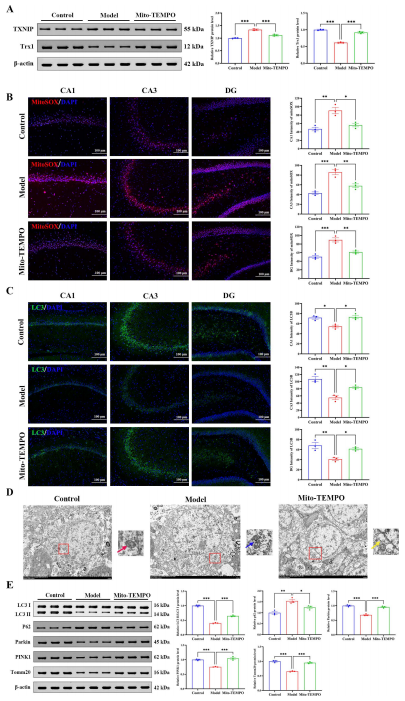
MitoSOX Red染色显示模型组海马切片超氧化物荧光强度显著增加,表明mtROS过量产生。透射电镜(TEM)观察到线粒体肿胀、嵴碎裂和外膜破裂。免疫荧光显示LC3B阳性斑点显著减少。Western blot显示LC3-II/LC3-I比值降低,PINK1和Parkin表达下降,p62积累,TXNIP显著上调。这些结果表明慢性应激通过损害PINK1/Parkin介导的线粒体自噬,破坏了受损线粒体的清除。
Mito-TEMPO缓解焦虑和抑郁样行为
线粒体靶向抗氧化剂Mito-TEMPO干预显著改善了模型大鼠的行为异常。OFT中,Mito-TEMPO显著增加了总运动距离和中央区运动距离;EPM中显著提高了开臂进入次数和时间百分比;SPT中恢复了糖水偏好率;FST中减少了不动时间。这些结果表明,药理学靶向mtROS足以全面逆转CRS/CORT诱导的行为表型。
Mito-TEMPO保护线粒体并恢复线粒体自噬
Western blot显示Mito-TEMPO有效逆转了应激诱导的Trx1下调并减弱了TXNIP上调。MitoSOX Red染色显示Mito-TEMPO几乎完全淬灭了模型组中强烈的超氧化物荧光。免疫荧光显示Mito-TEMPO恢复了LC3强度和LC3B阳性斑点。TEM成像显示线粒体超微结构得以保存,包括完整的嵴和增多的线粒体自噬体。Western blot进一步证实了线粒体自噬的功能恢复:LC3-II/LC3-I比值升高,Parkin、PINK1和Tomm20蛋白水平升高,p62积累减少。
Mito-TEMPO抑制NLRP3炎症小体通路激活
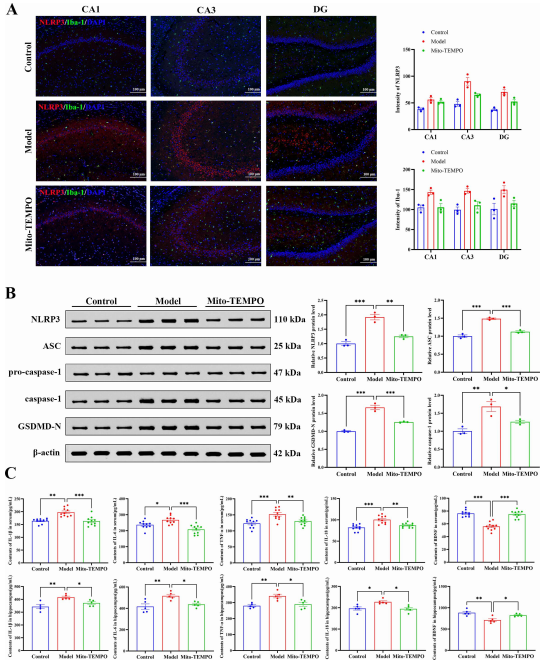
免疫荧光共染显示Mito-TEMPO显著降低了海马区NLRP3与小胶质细胞标志物Iba-1的共定位和荧光强度。Western blot证实Mito-TEMPO显著下调了NLRP3、ASC、caspase-1和焦亡执行蛋白GSDMD-N的表达。ELISA结果显示Mito-TEMPO逆转了慢性应激引起的促炎细胞因子(IL-1β、IL-18、IL-6、TNF-α)升高和BDNF降低。这些结果表明Mito-TEMPO通过抑制NLRP3炎症小体通路发挥广谱抗炎作用。
Mito-TEMPO通过恢复神经元形态和抑制凋亡发挥神经保护作用
HE和尼氏染色显示Mito-TEMPO减轻了神经元排列紊乱、核固缩,并恢复了尼氏体密度。TUNEL染色显示凋亡神经元数量显著减少。Western blot证实Mito-TEMPO使Bax/Bcl-2比值正常化,将凋亡平衡转向细胞存活。这些结果支持mtROS清除不仅纠正了功能和炎症紊乱,还赋予了应激海马的结构和细胞弹性。
小胶质细胞中TXNIP敲低减弱LPS诱导的炎症小体激活并保护神经元
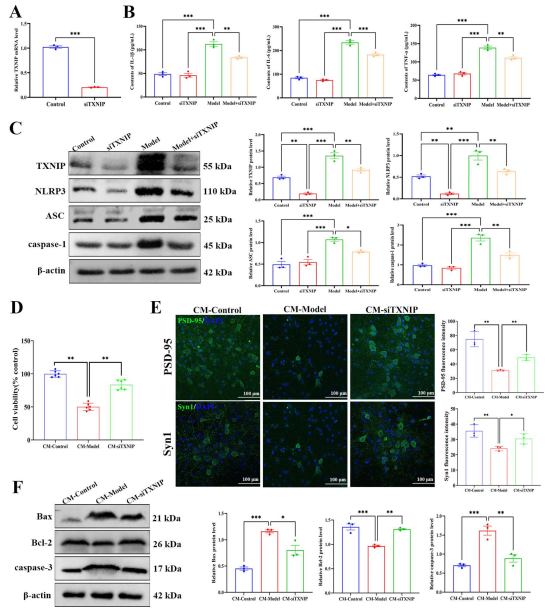
在BV2小胶质细胞中敲低TXNIP后,qPCR确认了高效沉默。LPS刺激显著诱导了促炎细胞因子(IL-1β、IL-6、TNF-α)的分泌,而TXNIP敲低显著减弱了这一效应。Western blot显示TXNIP抑制阻断了LPS上调的NLRP3、ASC和caspase-1表达。当HT22神经元接受不同处理的BV2细胞条件培养基(CM)处理后,CCK-8实验显示CM-Model降低了HT22活力,而TXNIP敲低逆转了这一效应。此外,CM-Model诱导了神经元损伤,降低了突触标志物PSD-95和Syn1的免疫荧光强度,并增加了促凋亡蛋白Bax和cleaved caspase-3的表达,同时降低了抗凋亡蛋白Bcl-2,所有这些变化均被TXNIP敲低所缓解。
总结
综合以上结果,本研究得出结论:ROS/TXNIP/NLRP3信号轴作为线粒体氧化应激与神经炎症之间的核心分子桥梁,驱动了焦虑性抑郁症的发病。具体而言,过量的mtROS破坏了Trx1/TXNIP氧化还原平衡,促进TXNIP与NLRP3结合激活炎症小体,同时抑制PINK1/Parkin介导的线粒体自噬,共同加剧神经元损伤和焦虑抑郁样行为异常;小胶质细胞中靶向TXNIP可减弱炎症小体激活并保护神经元免受炎症损伤。该研究不仅深化了对焦虑性抑郁症中线粒体氧化应激与神经炎症对话机制的理解,也为靶向线粒体氧化应激和TXNIP/NLRP3通路治疗焦虑性抑郁症提供了新的理论与技术参考。